Главный комплекс генов гистосовместимости. Главный комплекс гистосовместимости. Антигены гистосовместимости Главный комплекс гистосовместимости
ГЛАВНЫЙ КОМПЛЕКС ГИСТОСОВМЕСТИМОСТИ (ГКГ), комплекс генов, кодирующих белки, ответственные за представление (презентацию) антигенов (смотри Антигенпредставляющие клетки) Т-лимфоцитам при иммунном ответе. Первоначально продукты этих генов были идентифицированы как антигены, обусловливающие совместимость тканей, что и определило название комплекса (от английского major histocompatibility complex). У человека антигены ГКГ (и сам комплекс) называются HLA (от английского human leukocyte antigens), так как изначально они были обнаружены на лейкоцитах. Комплекс HLA локализуется в 6-й хромосоме и включает более 200 генов, разделённых на 3 класса. Деление на классы обусловлено особенностями структуры кодируемых ими белков и характером вызываемых иммунных процессов. Среди генов первых двух классов имеются так называемые классические гены, для которых характерен чрезвычайно высокий полиморфизм: каждый ген представлен сотнями аллельных форм. К классическим генам ГКГ человека относятся HLA-гены А, В, С (класс I), гены DR, DP и DQ (класс II). Гены ГКГ класса III кодируют белки, не имеющие отношения к гистосовместимости и презентации антигена. Они контролируют образование факторов системы комплемента, некоторых цитокинов, белков теплового шока.
Конечные продукты генов ГКГ представлены гликопротеинами, которые встраиваются в мембрану клеток. Гликопротеины ГКГ класса I присутствуют в клеточных мембранах практически всех ядросодержащих клеток, а гликопротеины класса II - только в антигенпрезентирующих клетках (дендритные клетки, макрофаги, В-лимфоциты, некоторые активированные клетки). В процессе образования гликопротеинов ГКГ класса I в их состав встраиваются образующиеся в ходе протеолиза фрагменты внутриклеточных белков, а в случае класса II - белков межклеточного пространства, поглощаемых клеткой. Среди них могут оказаться компоненты патогенных микроорганизмов. В составе гликопротеинов ГКГ они выносятся на поверхность клетки и распознаются Т-лимфоцитами. Этот процесс называется презентацией антигена: чужеродные антигенные пептиды представляются цитотоксическими Т-клеткам в составе гликопротеинов ГКГ класса I, Т-хелперам - в составе гликопротеинов ГКГ класса II.
Продукты различных аллельных форм генов ГКГ отличаются по сродству к различным пептидам. От того, какие аллели генов ГКГ присутствуют в данном организме, зависит эффективность защиты от того или иного патогена. Она определяется связыванием чужеродных пептидов с гликопротеинами ГКГ класса II, так как их презентация Т-хелперам лежит в основе всех форм иммунного ответа. В связи с этим гены ГКГ класса II рассматриваются в качестве генов иммунного ответа (генов Ir).
В определённых ситуациях иммунный ответ может быть вызван в результате презентации пептидных фрагментов собственных белков организма в составе молекул ГКГ класса II. Следствием этого может быть развитие аутоиммунных процессов, которое, таким образом, также находится под контролем генов ГКГ класса II.
Определение классических генов ГКГ (ДНК-типирование) осуществляется с помощью полимеразной цепной реакции при пересадке органов и тканей (для подбора совместимых пар донор - реципиент), в судебно-медицинской практике (для отрицания отцовства, идентификации преступников и жертв), а также в геногеографических исследованиях (для изучения родственных связей и миграции народов и этносов). Смотри также Иммунитет.
Лит.: Ярилин А. А. Основы иммунологии. М., 1999; Devitt Н. О. Discovering the role of the major histocompatibility complex in the immune response // Annual Review of Immunology. 2000. Vol. 18; Хаитов Р. М., Алексеев Л. П. Физиологическая роль главного комплекса гистосовместимости человека // Иммунология. 2001. №3.
3610 0
Возбудители, такие как бактерии и вирусы, могут проникать в клетки организма и заражать их. При этом Т-клетки организуют иммунный ответ против клеток, содержащих проникший микроорганизм. Как Т-клеткам удается распознавать инфицированные клетки и вообще присутствие любого чужеродного белка-антигена в клетках организма-хозяина?
Если сказать кратко, в настоящее время известно, что белки внутри клетки разделяются на более мелкие фрагменты - пептиды. Некоторые из них ассоциируются с молекулами МНС I или II класса, а образовавшийся комплекс перемещается на поверхность клетки, где может быть распознан Т-клеткой с соответствующим рецептором. В присутствии усиливающих сигналов Т-клетка активируется и инициирует иммунный ответ на распознанный антиген.
Все события, которые сопровождают образование пептидов из белка внутри клетки, связывание пептидов с молекулами МНС, представление комплексов МНС - пептид на поверхности клетки для распознавания Т-клетками, в целом называют процессингом и презентацией антигена В этом феномене молекулы МНС играют ключевую роль, и поэтому, как уже было отмечано ранее, говорят о МНС-рестрикции Т-клеточного ответа. Функции молекул МНС I и II классов в Т-клеточном ответе, однако, различны.
У всех исследованных видов позвоночных функция молекул МНС I класса состоит в презентации пептидов, полученных из белковых антигенов, CD8+-Т-клеткам. По этой причине принято говорить, что СD8+-Т-клетки подвергаются МНС-рестрикции I класса. В отличие от них основная функция молекул МНС II класса - представление антигенов CD4+-T-клеткам, поэтому они подвергаются МНС-рестрикции II класса.
Как пептиды, полученные из белковых антигенов, связываются с молекулами МНС? Далее описано, как процессинг двух разных групп белковых антигенов: экзогенных и эндогенных, приводит к связыванию пептидов с молекулами МНС I или II класса и как образование такого комплекса активирует разные группы Т-клеток.
Ответы на экзогенные антигены: образование комплексов молекула МНС II класса - пептид
Как следует из названия, экзогенными являются антигены, захваченные внутрь клетки обычно путем эндоцитоза или фагоцитоза. Экзогенные антигены являются фрагментами патогенных микроорганизмов (например, бактерий и вирусов) или чужеродных белков (например, белка куриного яйца или эритроцитов барана), которые хотя и не вредят организму-хозяину, активируют иммунный ответ. Особенно важны ответы на экзогенные антигены, захватываемые АПК - дендритными клетками, В-лимфоцитами или макрофагами.На рис. 9.5 показаны процессинг и презентация типичного экзогенного антигена - белка, введенного в качестве компонента инактивированной или «мертвой» вирусной вакцины. Попадая внутрь клетки, белок оказывается во внутриклеточной вакуоли, которая впоследствии сливается с существующими эндосомами или лизосомальными вакуолями. Эндосомы и лизосомы обладают очень кислой средой (рН около 4) и содержат целый ряд разрушительных ферментов, включая протеазы и пептидазы. Предполагается, что также протеазы, как катепсины, которые действуют в кислой среде, вовлечены в избирательное разрезание белков в этих вакуолях.
На рис. 9.5 также изображено, что закисленные вакуоли, содержащие фрагменты белков, встречаются внутри клетки с вакуолями, которые содержат вновь синтезированные молекулы МНС II класса. Цепи α и β молекулы МНС II класса синтезируются на рибосомах шероховатого эндоплазматического ретикулума. Внутри него эти цепи связываются с молекулой CD74 - инвариантной цепью (Ii). Одна из областей CD74 взаимодействует с полостью только что синтезированной молекулы МНС II класса, предотвращая связывание с пептидами, которые могут находиться в эндоплазматическом ретикулуме. (Это может запустить процессинг эндогенных антигенов, описанный в следующем подразделе.)
Молекула CD74 выступает также в роли «шаперона» для вновь синтезированных цепей МНС II класса: взаимодействие с CD74 позволяет α-и β-цепям покинуть эндоплазматический ретикулум и попасть в комплекс Гольджи, а оттуда включиться в формирование эндоцитозных вакуолей с кислой средой. В кислой среде вакуолей CD74 удаляется из молекулярного комплекса. Вначале CD74 разрушается протеолитическими ферментами, и от него остается только фрагмент CLIP, связанный с полостью молекулы МНС II класса.
Затем вакуоли, содержащие молекулы МНС II класса, связанные с СLIР, сплавляются с вакуолями, обладающими кислой средой (эндосомами/лизосомами), которые содержат пептиды, полученные в ходе катаболизма экзогенных антигенов. В этих образованиях молекула, которую называют HLA-DM, облегчает замену пептида в комплексе молекула МНС II класса - CLIP на пептиды, образовавшиеся из экзогенного антигена. Так формируется комплекс молекула МНС II класса- пептид, который перемещается к поверхности клетки, где он может взаимодействовать с CD4+-Т-клетками, экспрессирующими рецептор, соответствующий антигену.
Рис. 9.5. Образование комплексов антигенных пептидов экзогенного происхождения с молекулами МНС II класса: N инвариантная цепь; CLIP - фрагмент CD74, который связывается с полостью молекулы МНС II класса
Катаболизм типичного белкового антигена приводит к образованию нескольких пептидов (на рис. 9.5 показаны только три). На рис. 9.6 показано, что связывание молекулы МНС II класса и пептидов, прошедших процессинг, является селективным: отдельный пептид связывается с высокой аффинностью с несколькими, но не со всеми молекулами МНС. Эта селективность основана на силе взаимодействия между аминокислотами в составе полости, связывающей белки, в молекуле МНС и аминокислотами в составе пептидов, появившихся в результате процессинга.
На рис. 9.6 пептид 35-48 (числа обозначают позиции аминокислот в белковой последовательности) предпочтительно связывается с HLA-DR4, а пептид 110-122 - с HLA-DP2 у человека, организм которого экспрессирует эти молекулы. Поэтому мы можем назвать пептиды 35-48 и 110-122 иммунодоминантными Т-клеточными эпитопами обсуждаемого белка у данного человека, поскольку они связываются с молекулами МНС, презентируются и активируют СD4+-Т-клетки.
Рис. 9.6. Избирательное связывание процессированных пептидов различными аллелями МНС II класса. Числа соответствуют позициям аминокислот в последовательности белкового антигена

Процессинг эндогенных антигенов происходит скорее в цитоплазме, нежели в вакуолях с кислой средой, в которых обрабатываются экзогенные антигены. Главный механизм образования пептидных фрагментов в цитоплазме связан с прохождением белка через гигантский белковый комплекс - протеазому. Этот комплекс раскалывает белок на пептиды длиной около 15 аминокислот. Цитозольные ферменты (аминопептидазы) удаляют из пептидов еще больше аминокислот. Некоторые пептиды разрушаются, но некоторые (длиной 8-15 аминокислот) избирательно транспортируются в эндоплазматический ретикулум пептидным транспортером, продуктом двух генов, ТАР-1 и ТАР-2.
Рис. 9.7. Процессинг эндогенного антигена с участием молекул МНС I класса: β2m -β2-микроглобулин

В эндоплазматическом ретикулуме пептиды, транспортированные из цитозоля, связываются с вновь синтезированными молекулами МНС 1 класса: рис. 9.7 также показывает, что молекулы МНС I класса и цепи β2-микроглобулина отдельно синтезируются в эндоплазматическом ретикулуме и здесь же объединяются. Так же, как и в случае вновь синтезированных молекул МНС II класса, стабилизировать структуру собранных в эндоплазматическом ретикулуме молекул МНС I класса и цепей β2-микроглобулина и направить комплекс пептид - МНС I класса - β2-микроглобулин сквозь клетку помогают дополнительные белки. Наиболее изученными дополнительными белками, уникальными для транспортировки МНС I класса в эндоплазматический ретикулум, являются тапазин и шаперон калретикулин.
Молекулы МНС I класса предпочтительно связывают пептиды длиной 8-9 аминокислот, т.е. более короткие, чем те, что связываются с молекулами МНС II класса, поскольку полость в связующем участке закрыта с обоих концов. Результаты недавних исследований показали, что обычно пептиды, достигающие эндоплазматического ретикулума, разрушаются аминопептидазами, которые отрезают одну аминокислоту за другой до полного разрушения пептида. «Спасаются» только пептиды длиной 8-9 аминокислот, если связываются с вновь синтезированной молекулой МНС I класса.
Как и в случае взаимодействия пептид - МНС II класса, связывание пептидов с молекулами МНС I класса селективно и определяется последовательностью и структурой пептида и связующей полости МНС I класса. Пептид, связывающийся с молекулой МНС I класса в эндоплазматическом ретикулуме, проходит через комплекс Гольджи к клеточной поверхности, где презенти-руется СD8+-Т-клеткам, экспрессирующим соответствующий антигенный рецептор.
Другие пути процессинга и презентации антигенов
В предыдущих подразделах было описано, как пептиды из эндогенных и экзогенных антигенов взаимодействуют с вновь синтезированными молекулами МНС I и II классов на пути их следования к клеточной поверхности. Данные также наводят на мысль, что пептиды могут связываться с некоторыми молекулами МНС на клеточной поверхности или с молекулами МНС, не содержащими пептиды, или за счет вытеснения прежде связанных пептидов. Пептиды могут также пересекаться с молекулами МНС, которые уже были экспрессированы на поверхности клеток и затем рециркулировали с поверхности назад в клетку.Таблица 9.1. Сравнение свойств и функций молекул МНС I и II классов

Такие АПК, как дендритные клетки и макрофаги, также имеют уникальный путь для образования пептидов, презентируемых СD8+-Т-клеткам, - перекрестное примирование. Эти АПК могут захватывать экзогенные белковые антигены и обрабатывать их по пути МНС I класса (в дополнение к пути МНС II класса). Предполагается, что этот путь играет важную роль в активации CD8+-T-клеток в ответах на инфицированные вирусом клетки и некоторые опухоли.
В табл. 9.1 сравниваются свойства молекул МНС I и II классов и роль этих молекул в обработке (процессинге) и презентации антигенов.
Какие антигены запускают ответ каких Т-клеток?
Уже было рассказано, как экзогенные белковые антигены захватываются АПК, перерабатываются в органеллах с кислым содержимым, которые пересекаются с молекулами МНС II класса, перемещающимися своим путем, и активируют CD4+-Т-клетки. Можно сказать, что почти все без исключения белки бактерий, вирусов, аллергены (белки, запускающие аллергический ответ) или полностью безвредные антигены запускают ответ СD4+-Т-клеток. Также было рассмотрено, как из белков, извлеченных из возбудителей, инфицировавших клетки, - бактерий и вирусов, создаются эпитопы (по эндогенному пути или путем перекрестного примирования), которые презентируются СD8+-Т-клеткам. Таким образом, белки, извлекаемые из этих инфекционных агентов, активируют CD4+- и СD8+-Т-клетки.Заметим, что пути процессинга в большей степени, чем свойства антигенов, определяют, представляется ли белок CD4+- или СD8+-Т-клеткам. Это положение хорошо иллюстрирует перекрестное примирование, при котором экзогенный антиген перерабатывается по пути МНС I класса и презентируется СD8+-Т-клеткам. Антигены, которые введены в цитоплазму, могут создавать пептиды для представления СD8+-Т-клеткам; этот подход может быть полезен для создания ответов на опухолевые антигены.
Рис. 9.8. Распознавание различных антигенов TCR. (А) Суперантиген связывается с Vβ. (Б) Презентация гликолипида молекулой CD1

Суперантигены - это другая категория белковых антигенов. У человека к ним в первую очередь относятся бактериальные токсины, такие как стафилококковый энтеротоксин. У мыши суперантигенами могут быть также продукты некоторых вирусов. Суперантигены связываются с молекулами МНС II класса без предварительного процессинга, но, как показано на рис. 9.8, А, бактериальные суперантигены связываются с участком молекулы МНС II класса вне связывающей пептид полости.
На рис. 9.8, А также показано, что суперантигены связываются с Vβ-областью TCR независимо от экспрессируемой Vα-области. Характерно, что суперантигены связываются с частью Vβ-участка TCR, кодируемого в зародышевой линии, а не с его частью, которая формируется при реаранжировке V-, D- или J-сегментов β-цепи TCR. Таким образом, поскольку существует только около 25 эмбриональных генов Vβ и каждый суперантиген связывает от одной до нескольких эмбриональных последовательностей Vβ, то суперантиген может активировать большое количество Т-клеток организма - до 10 %, что намного больше, чем обычные антигены.
Распознавание липидов
За последние 10 лет выяснилось, что Т-клетки могут распознавать липиды и гликолипиды так же хорошо, как антигены, извлеченные из белков. Т-клеточный ответ на липидные и гликолипидные продукты клеточной стенки, извлеченные из микобактерий, хорошо известен. На рис. 9.8, Б показано, что гены и продукты семейства, названного CD1, участвуют в презентации этих липидов и гликолипидов. Молекулы CD1 имеют отдаленное родство с семейством молекул МНС I и II классов, и предполагают, что они составляют третье семейство антигенпрезентирующих молекул, обеспечивающих презентацию Т-клеткам липидных и гликолипидных антигенов, извлеченных из микробных возбудителей.Молекулы CD1 являются неполиморфными гликопротеинами клеточной поверхности, не относящимися к семейству МНС. Они экспрессируются в ассоциации с β2-микроглобулинами на таких АПК, как дендритные и В-клетки. Соединение липидных антигенов с CD1, как предполагают, происходит в клеточных везикулах с кислым содержимым, так же как и при погружении экзогенных пептидов в молекулы МНС II класса. На рис. 9.8, Б показано, что структура кристаллизованных молекул CD1 сходна со структурой молекул МНС I класса, но у CD1 есть больший связывающий участок с глубокой полостью.
Полость, вероятно, связывает гидрофобную основу липидного антигена; поляризованный участок липида или гликолипида помещается в желобок для связывания с Т-клеточным рецептором. Было показано, что разные представители семейства CD1 представляют антигены γδ+- и αβ+-Т-клеткам и субпопуляции αβ+-Т-клеток, называемой 1МК1.1-СD4-Т-клетки. т.е. клеткам, которые экспрессируют одновременно поверхностные молекулы натуральных киллеров и Т-клеток.
Связывание молекулами МНС пептидов, полученных из собственных молекул
Теперь известно, что феномены процессинга и презентации антигенов являются компонентами нормальной физиологической жизнедеятельности клетки. Другими словами, белки, которые обычно находятся внутри клетки, - собственные белки - превращаются и метаболизируются тем же путем. Например, рибосомальные или митохондриальные белки разрушаются внутри клетки и пептиды, получившиеся из этих молекул, связываются с молекулами МНС. Действительно, молекулы МНС, экстрагированные из клеток, почти всегда содержат пептиды, выделенные из таких собственных белков.Однако собственные пептиды, связанные с молекулами МНС, обычно не активируют Т-клетки; одна из причин этого состоит в том, что Т-клетки, реактивные к собственным молекулам, удаляются или инактивируются в ходе дифференцировки в тимусе. Тем не менее известно, что зрелые Т-клетки, потенциально способные реагировать с собственными молекулами, можно обнаружить за пределами тимуса.
Почему эти Т-клетки не активируются? Учитывая, что клетки организма буквально купаются в море собственных белков, которые они постоянно процессируют и связывают с молекулами МНС, не менее важно узнать, как человеку удается отвечать на крошечные количества чужеродных белков. Это принципиально важные вопросы, поскольку Т-клетка должна быть способна выделить среди множества нормальных клеток собственного организма, на которые не требуется вызвать иммунный ответ, клетку, инфицированную возбудителем, на который необходимо развить иммунный ответ, чтобы его уничтожить.
Вероятно, ответ на эти вопросы заключается в том, что для активации иммунного ответа патогенные микроорганизмы используют дополнительные более выраженные эффекты, чем те, что обеспечивают активацию лимфоцитов только при взаимодействии с выделенным пептидом, связанным с молекулами МНС. Главный эффект, который вызывают возбудители, заключается в индукции костимуляторной функции, также называемой вторыми сигналами, в специализированных клетках, которые представляют антиген Т-клеткам. Костимуляторные сигналы необходимы для активации наивных Т-клеток (т.е. никогда ранее не встречавшихся с антигеном).
В отличие от патогенов пептиды, полученные из собственных белков, обычно взаимодействуют с Т-клетками на клетках нормальной ткани (например, печени или селезенки), которые не экспрессируют сигналов с костимуляторной функцией; в этом случае Т-клетки не активируются. Даже если пептиды, полученные из собственной молекулы, презентируются АПК в ткани, Т-клетки не активируются. Это происходит благодаря тому, что АПК в тканях обычно не экспрессируют костимуляторных сигналов в отсутствие чужеродного антигена или воспалительного ответа. Эта необходимость в дополнительных сигналах и наличии комплексов МНС-пептид означает, что Т-клетки не будут отвечать на собственные компоненты, а будут отвечать на чужеродные потенциально опасные антигены.
Некоторые ученые предполагали, что экспозиция чужеродного антигена может индуцировать повреждение ткани («гипотеза опасности») и что сигналы опасности, генерируемые таким образом, активируют Т-клетки. Эту гипотезу предложили, чтобы объяснить, почему Т-клетки отвечают на чужеродные белки и не отвечают на собственные. Согласно гипотезе собственные белки не образуют сигналов опасности. Для оценки и подтверждения этой гипотезы необходимы дальнейшие исследования.
Неспособность отвечать на антиген
Как уже описано в предыдущих подразделах, на клетках любого организма экспрессируется небольшое число разных молекул (антигенов) МНС I класса (6) и II класса (обычно от 10 до 20 у людей; 6 у мышей). Для того чтобы развить Т-клеточный ответ, хотя бы один пептид, полученный в результате процессинга, должен связаться с одной из этих молекул МНС. Пептид, который не делает этого, не вызывает Т-клеточного ответа. Поэтому вполне вероятно, что некоторые организмы будут отвечать на небольшой пептид, а другие особи, отличные по антигенам МНС, не будут. Подобная ситуация может возникнуть, если нескольким людям инъецируют белковую вакцину; кто-то сформирует на нее ответ, а кто-то - нет.Если из целого антигена не удается выделить ни одного пептида, способного связаться с молекулой МНС, то в таком организме Т-клеточный ответ на этот конкретный антиген не разовьется. Этот тип нечувствительности к целому антигену может возникнуть, например, при ответе на синтетические полимеры аминокислот, которые содержат очень небольшое количество эпитопов. У патогенных микроорганизмов обычно множество эпитопов, поэтому неспособность к ответу на естественные (природные) патогены встречается крайне редко.
Различия в молекулах МНС: связь МНС с устойчивостью или восприимчивостью к заболеваниям
Полиморфизм является серьезным препятствием для приживления ткани, трансплантированной от одного организма к другому, поскольку очень маловероятно, что два случайных индивидуума будут генетически идентичны. Поскольку почти каждый вид позвоночных вырабатывает подобные различные наборы генов и молекул МНС, поддержание разнообразия МНС должно иметь какое-то биологическое преимущество для вида в целом.Считается, что поддержание разнообразия молекул МНС является важным механизмом, который используют человек и животные, чтобы защитить себя от массы патогенных организмов. Чтобы проиллюстрировать это положение, представим ситуацию, при которой в популяции существует только одна молекула МНС, а вновь возникший возбудитель не продуцирует эпитоп, способный с ней связаться. В этом крайнем случае Т-клеточный ответ не будет активирован, и может исчезнуть целый вид. Таким образом, поддержание большого числа генов и молекул МНС в пределах вида значительно снижает риск такого негативного эффекта от одного возбудителя.
Пример того, как разнообразие аллелей МНС может влиять на прогрессирование заболевания, был получен при исследовании пациентов, инфицированных ВИЧ-1. У индивидуумов, гетерозиготных (т.е. экспрессирующих разные продукты с отцовской и материнской хромосом) по одному или более локусу HLA I класса, СПИД развивался позднее, чем у гомозиготных (экспрессирующих одинаковые продукты с генов обеих хромосом) индивидуумов. Одним из возможных объяснений этого является то что гетерозиготы по HLA могут презентировать своим Т-клеткам более широкий спектр пептидов, полученных от возбудителей, чем гомозиготы, и поэтому у них более вероятно развитие какого-либо типа защитного ответа.
В последние годы стало понятно, что экспрессия определенного аллеля МНС является одним из важнейших факторов, определяющих восприимчивость или устойчивость к различным инфекционным агентам. У людей экспрессию специфических аллелей HLA связывают с чувствительностью или устойчивостью к нескольким возбудителям разных инфекционных заболеваний, таким как Т-лимфотропный вирус человека первого типа (HTLV-1), вирус гепатита В, возбудители лепры, малярии, туберкулеза, а также склонностью к быстрому прогрессированию СПИДа.
Подобные связи восприимчивости и резистентности с МНС были показаны и для других видов, в частности болезнь Марека (вирусное заболевание кур) и вирус бычьего лейкоза у коров. Практически для всех известных примеров болезней или состояний, связанных с определенным аллелем МНС, точные механизмы, связывающие обладание геном с началом или прогрессированием заболевания, пока не определены. У пациентов с определенными аллелями HLA существует больший риск развития определенных аутоиммунных или воспалительных болезней.
Другие гены области МНС
Картирование областей МНС у людей и мышей показало, что они содержат намного больше генов (и псевдогенов), чем зоны кодирования полиморфных молекул МНС I и II классов, описанные в этой главе. Область МНС между генами I и II классов содержит гены МНС III класса, которые кодируют компоненты сывороточной системы комплемента С2, С4 и фактор В. У людей эта область также содержит и несколько различных генов: два цитокина (факторы некроза опухоли α и β), два белка теплового шока (hsp 70-1 и 70-2) и 21-гидроксилазу (фермент, участвующий в метаболизме стероидов). Были идентифицированы дополнительные человеческие (HLA-E, F и G) и мышиные гены МНС I класса (Qa и TLa), значительно менее полиморфные, чем гены I класса.Функция продуктов большинства этих генов в настоящее время не очень понятна, но они могут участвовать в презентации антигенов для Т-клеток. Предполагается, что экспрессия HLA-G клетками трофобласта плаценты является одним из механизмов, предотвращающих отторжение плода организмом матери.
Область МНС II класса также содержит не только гены, кодирующие молекулы клеточной поверхности, которые описаны в этой главе. В частности, это гены HLA-DM и HLA-DO в области II класса у человека (М и О у мышей). Как было описано ранее, HLA-DM катализирует замену пептидов (CLIP, который образуется из инвариантной цепи) на пептид из чужеродного белка. Ген HLA-DO экспрессируется только в В-лимфоцитах и эпителиальных клетках тимуса; белок работает как отрицательный регулятор пептидного обмена, опосредованного HLA-DM.
Гены, которые кодируют молекулы, вовлеченные в путь презентации антигена с участием МНС I класса, - белковые транспортные молекулы ТАР-1 и ТАР-2 и главные субъединицы протеазомы LMP-2 и LMP-7, - также находятся в области МНС II класса. Почему все эти гены объединены в комплекс, который передается по наследству в единстве с генами, кодирующими основные молекулы межклеточных взаимодействий, в настоящее время науке неизвестно.
Выводы
1. Молекулы МНС играют ключевую роль в ответе Т-клеток на антигены, которые проникают в клетки организма или живут в них. Эти молекулы связывают пептиды, полученные из антигенных белков, и презентируют их Т-клеткам с соответствующим рецептором. Поэтому говорят о МНС-рестрикции Т-клеточного ответа2. Область МНС кодирует две большие группы трансмембранных поверхностных клеточных молекул - I и II классы. Молекулы МНС I класса экспрессируются на всех ядросодержащих клетках. Молекулы МНС II класса экспрессируются конститутивно только на АПК, таких как В-клетки или дендритные клетки. Экспрессию молекул МНС II класса можно индуцировать на клетках многих типов, особенно в ответ на цитокины, которые выделяются при ответе на инфекционные агенты.
3. Каждый индивидуум экспрессирует набор разных молекул МНС I и II классов. Эти различия появляются из-за того, что у конкретных организмов внутри вида встречаются множество слегка отличающихся форм (аллелей) генов МНС обоих классов (генетический полиморфизм). Благодаря выраженному полиморфизму каждый человек обладает почти уникальным набором наследуемых генов МНС.
4. Внутри одного организма молекулы МНС I и II классов одинаковы на всех клетках; их экспрессия на клеточной поверхности кодоминантна (т.е. присутствуют продукты как с материнской, так и с отцовской хромосомы).
5. На внешней области каждой молекулы МНС I и II классов находится глубокая бороздка (полость), которая связывает пептиды, полученные в результате катаболизма (процессинга) белковых антигенов. Пептиды с молекулами МНС связываются селективно. Каждая молекула МНС связывает свой набор пептидов с определенным мотивом.
6. Экзогенные белковые антигены захватываются внутрь АПК и процессируются до пептидов в вакуолях с кислой средой, где взаимодействуют с молекулами МНС II класса. Комплекс пептид - молекула МНС II класса транспортируется на поверхность клетки, где взаимодействует с TCR, экспрессируемым СD4+-Т-клеткой. Говорят о рестрикции ответа CD4+-T-клеток молекулами МНС II класса (собственными молекулами МНС II класса).
7. Эндогенные белковые антигены, в основном принадлежащие инфекционным патогенам, проникают внутрь клетки и процессируются до пептидов в цитозоле. Пептиды, полученные из этих белков, взаимодействуют с молекулами МНС I класса внутри эндоплазматического ретикулума. Комплекс пептид-молекула МНС I класса транспортируется на поверхность клетки, где взаимодействует с TCR, экспрессируемым CD8+-T-клеткой. Говорят о рестрикции ответа СD8+-Т-клеток молекулами МНС I класса (собственными молекулами МНС I класса).
8. Поскольку белки являются достаточно сложными структурами, обычно образуется хотя бы один пептид, способный связаться с молекулой МНС, что обеспечивает Т-клеточный ответ по меньшей мере на какую-то часть чужеродного антигена.
9. Молекулы МНС связывают пептиды, полученные из собственных белков, так же как и от чужеродных антигенов, но комплексы молекул МНС с собственными пептидами в нормальных условиях не активируют Т-клеточный ответ. Это связано с тем, что обычно собственные молекулы не генерируют костимуляторные (вторые) сигналы, необходимые для активации наивных Т-клеток. Т-клеточный ответ сфокусирован на противодействии чужеродным (несобственным) молекулам, в частности компонентам микроорганизмов, которые запускают костимуляторные функции.
10. Восприимчивость или устойчивость к большинству болезней у людей и других видов связана с экспрессией определенного аллеля МНС.
Р.Койко, Д.Саншайн, Э.Бенджамини
При первой пересадке сердца человека, сделанной в 1967 г. К. Барнардом, и сотнях последующих хирурги столкнулись с проблемой отторжения трансплантата. Оказалось, что главная трудность заключается не в технике операции, которая сейчас разработана достаточно хорошо, а в несовместимости тканей, обусловленной иммунологическими механизмами. Так, у человека выживание трансплантатов реципиентов, взятых от случайного донора, составляет 10,5 дня, тогда как трансплантаты, обмененные между однояйцовыми близнецами (изотрансплантаты), приживаются. Это происходит благодаря наличию на поверхности клеток антигенов, называемых трансплантационными антигенами или антигенами гистосовместимости. Большинство трансплантационных антигенов расположены на лейкоцитах, но они имеются и на всех других ядросодержащих клетках (клетках кожи, легких, печени, почек, кишечника, сердца и т. д.). Гены, кодирующие эти антигены, называются генами тканевой совместимости. Система генов, контролирующая трансплантационные антигены лейкоцитов, названа главным комплексом гистосовместимости (англ. Major Histocompatibility complex - МНС). Гены гистосовместимости кодоминантны.
Эффективность трансплантации зависит не только от лейкоцитарных и эритроцитарных антигенов, но и от минорной системы гистосовместимости. Трансплантаты между монозиготными близнецами приживаются. Однако у братьев и сестер при совпадении по МНС-гаплотипам, но несовпадении по минорным системам гистосовместимости происходит отторжение трансплантатов кожи.
После иммуноглобулинов и рецепторов Т-клеток белки главного комплекса гистосовместимости самые разнообразные из всех белков. Различают два класса белков МНС. Белки класса I находятся на поверхности почти всех клеток. Молекула белка состоит из двух полипептидных цепей: большой и малой. Белки
МНС класса II имеются на поверхности некоторых клеток (В-" лимфоциты, макрофаги, специализированные эпителиальные., клетки), а их молекула состоит из примерно равных полипептид-* ных цепей. Белки МНС имеют некоторое сходство с иммуноглобулинами. Основная роль белков МНС состоит не в отторжении чужой ткани, а в направлении реакции Т-клеток на антиген. Цитотоксические Т-клетки могут узнавать антиген, если он расположен вместе с белками МНС класса I на поверхности одной клетки. Т-хелперы узнают антиген в комбинации с белками МНС класса П. Такое двойное стимулирование называется МНС-о граничением. Впервые главную систему тканевой совместимости мыши Н-2 открыл П. Горер в 1936 г. Кроме Н-2 найдено много локусов тканевой совместимости, расположенных во всех хромосомах.
В 1980 г. Д. Снелл, Ж. Доссе и Б. Бенацерафф получили Нобелевскую премию за «различные аспекты исследования, приведшего к современному пониманию системы генов гистосовместимости человека». Д. Снелл сформулировал основные генетические законы совместимости тканей и получил данные о тонком строении локуса Н-2 у мышей.
Система Н-2 довольно хорошо изучена, поэтому она служит хорошей моделью для исследования МНС у других видов животных. Комплекс Н-2 включает несколько тесно сцепленных локусов длиной 0,35 сМ, расположенных в 17-й хромосоме. Комплекс Н-2 разделен на пять областей: К, I, S, G, D (рис. 56).
Рис. 36.1-1. Строение молекулы МНС-I.
а. Как и все молекулы иммуноглобулинового суперсемейства (см. раздел 31) МНС-I состоит из двух полипептидных цепей.
1. Тяжелая полипептидная цепь обозначается как α-цепь, она проникает сквозь цитоплазматическую мембрану АПК, «заякореваясь» в ее цитоплазме.
2. Легкая цепь, обозначаемая как β2-микроголоблин, имеет значительно меньший размер и не имеет цитоплазматического участка.
б. Тяжелая цепь формирует углубление (клефт) в которое помещается 8-10 аминокислотных остатков презентируемого антигена.
Б. Молекулы МНС второго класса обычно обозначаются как МНС-II.
1. МНС-II экспрессированы, в отличие от МНС первого класса, лишь на некоторых клетках.
а. Во первых, они экспрессируются на профессиональных антигенпредставляющих клетках, а именно:
– на макрофагах/моноцитах,
– дендритных клетках,
– В-лимфоцитах.
б. Во-вторых, МНС-II экспрессируются на клетках эндотелия сосудов.
2. МНС второго класса связываются с антигенами мембранных структур клетки (т.е. той зоны клетки, которая непосредственно сообщается с внешней средой).
а. Поэтому МНС-II презентируют (представляют) Т-лимфоцитам антигены возбудителей внеклеточных инфекций.
б. Кроме этого МНС-II презентируют (представляют) Т-лимфоцитам антигены возбудителей так называемых везикулярных инфекций, которые находятся в клетке внутри везикул, а не непосредственно в цитоплазме (например, хламидий).
3. МНС второго класса представляют антиген CD4-лимфоцитам.
4. Строение молекулы МНС-II иллюстрирует Рис. 36.1-2.

Рис. 36.1-2. Строение молекулы МНС-II.
а. Как и все молекулы иммуноглобулинового суперсемейства (см. раздел 31) МНС-II состоит из двух полипептидных цепей. В отличие от молекул МНС-I, эти цепи – α- и β- – примерно одинаковые и обе проникают сквозь цитоплазматическую мембрану АПК, «заякореваясь» в ее цитоплазме.
б. Углубление (клефт), в которое (также в отличие от МНС-I) помещается до 30 аминокислотных остатков, формируется не одной, а обеими цепями.
ГЕНЕТИКА ГЛАВНОГО КОМПЛЕКСА ГИСТОСОВМЕСТИМОСТИ
МНС (Major Histocompatibility Complex) - главный комплекс гистосовместимости - система генов, кодирующих антигены, определяющих функционирование иммунной системы
HLA (Human Leucocyte Antigen) - главный комплекс гистосовместимости человека
История открытия
Открытие МНС.
Нобелевская премия 1980 г.
Жан Доссе
Открыл первый антиген гистосовместимости человека (HLA)

Джордж Снелл
Открыл антигены гистосовместимости у мыши (комплекс Н-2)

Барух Бенацерраф
Открыл гены иммунного ответа (Ir-гены)
Функции МНС
- · Распознавание «свой - чужой» - реакция отторжения трансплантата, РТПХ (реакция трансплантат против хозяина)
- · Регуляция взаимодействий клеток иммунной системы - рестрикция вовлечения в иммунный ответ лимфоцитов, через презентацию АГ
- · Регуляция силы иммунного ответа на антиген - гены иммунного ответа (Ir) - от англ. immune response
ХАРАКТЕРИСТИКИ МНС
Гены комплекса MHC (в отличие от генов TCR и Ig) не подвергаются рекомбинации.
Механизм их приспособления к вариабельности (неограниченному множеству потенциальных АГ) заключается в их генетическом полиморфизме, полигенности и кодоминантном типе наследования
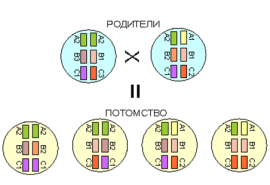
ПОЛИМОРФИЗМ
Существование большого количества различных специфичностей HLA-генов в пределах каждого локуса. Гены отличаются между собой по нуклеотидным последовательностям, входящим в вариабельный участок ДНК
ПОЛИГЕННОСТЬ
Наличие нескольких неаллельных близкосцепленных генов, белковые продукты которых сходны в структурном отношении и выполняют идентичные функции
ПОЛИГЕННОСТЬ и ПОЛИМОРФИЗМ
Система HLA, включает гены
1 класса: А, В, С; 2 класса: DR, DP, DG

ГЕНЕТИЧЕСКАЯ КАРТА МНС
Номер хромосомы человек - 6р 21.1-21.3
Гены MHC делятся на три группы.
Каждая группа включает гены, контролирующие синтез полипептидов одного из трех классов MHC


· MHC-I класс
Гены групп HLA-A, HLA-B и HLA-C кодируют молекулы MHC класса I.
· MHC-II класс
Гены групп HLA-DP, HLA-DQ и HLA-DR кодируют молекулы MHC класса II. гистосовместимость генетический полиморфизм вирусный
- · MHC-III обозначает область между MHC-I и MHC-II, здесь картированы гены, кодирующие некоторые компоненты системы комплемента (C4a и C4b, С2, фактора В), цитокинов - (TNF-б и лимфотоксина), 21-гидроксилазы (фермента, участвующего в биосинтезе стероидных гормонов) и др.
- · Неклассические гены не принадлежат ни к одному из классов MHC. Описано 6 таких генов в области расположения генов MHC-I (Е, F, G, Н, J, X), и 6 - в области MHC-II (DM, DO, CLIP, TAP, LMP, LNA)
НАСЛЕДОВАНИЕ МНС
Гены MHC кодоминантны, т.е. одновременно экспрессируются гены материнской и отцовской хромосом. Генов MHC-I по 3 (А, В, С) в каждой из гомологичных хромосом, генов MHC-II - также по 3 (DP, DQ, DR); следовательно, если у матери и отца нет одинаковых аллелей, то каждый человек имеет как минимум 12 различных основных аллелей каждого гена MHC классов I и II, вместе взятых.
Кодоминантность

Известно около 2000 аллельных генов.
Аллели HLA I класса - более 900
Аллели HLA II класса - более 600

Продукты генов МНС играют центральную роль в распознавании «свой-чужой» при иммунном реагировании
СТРОЕНИЕ
классических МНС
Класс I
Класс II
ЛОКУСЫ ЛОКУСЫ
А, В, С DP, DQ, DR
МНС I класса
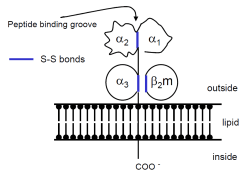
Молекула I класса состоит из 2-х цепей. Тяжелой б-цепи и легкой в2-микроглобулина
б-цепь, включает три фрагмента: внеклеточный, трансмембранный и цитоплазматический.
Внеклеточный содержит 3 домена - б1, б2 и б3. Связывание антигенного пептида происходит в щели, образованной б1- и б2-доменами.
Экзонная организация генов, кодирующих б-цепь молекул I класса
- 1 экзон, кодирующий сигнальный пептид,
- 4 экзона, кодирующие 3 внешних и трансмембранный домены,
- 2 экзона, кодирующие небольшой цитоплазматический домен
Экспрессия и функции МНС 1 класса
Экспрессия антигены представлены на всех клетках, тканях и органах, поэтому они являются главными трансплантационными антигенами.
- · Реакция отторжения трансплантата;
- · Рестрикция активности цитотоксических реакций Т-киллеров.
Презентация АГ
MHC-I «обслуживают» зону цитозоля, сообщающегося через ядерные поры с содержимым ядра. Здесь происходит фолдинг синтезированных белковых молекул.
При возникновении ошибок (в том числе и при синтезе вирусных белков) белковые продукты расщепляются в мультипротеазных комплексах (протеосомы). Образующиеся пептиды связываются с молекулами MHC-I, которые представляют T-лимфоцитам внутриклеточно образующиеся пептидные АГ. Поэтому CD8+ T-лимфоциты, которые распознают комплексы АГ с MHC-I, участвуют в первую очередь в защите от вирусных, а также внутриклеточных бактериальных инфекций
Этапы подготовки вирусных белков к взаимодействию с молекулами I класса главного комплекса гистосовместимости

I этап - разрушение вирусных белков, находящихся в цитозоле, с помощью протеазного комплекса - протеосомы.
II этап - транспорт образовавшихся пептидов во внутреннее пространство эндоплазматического ретикулума с помощью ТАР-1 и ТАР-2, образующих гетеродимер на эндоплазматической мембране.
III этап - встреча транспортируемых пептидов с молекулами I класса МНС. Взаимодействие пептида с молекулой I класса приводит к отсоединению калнексина. Образовавшийся комплекс пептид: молекула I класса готов к дальнейшему транспорту к плазматической мембране.
IV этап - комплекс через аппарат Гольджи транспортируется к клеточной поверхности, вирусный пептид в комплексе с молекулой I класса МНС становится доступным (иммуногенным) для его распознавания TCR
МНС II класса
Молекула II класса гетеродимер из двух нековалентно связанных цепей б и в, каждая из которых включает два домена: б1, б2 и в1, в2 (соответственно). Антигенсвязывающую областьобразуют б1- и в1-домены.
Экзонная организация генов, кодирующих б и в-цепи молекул II класса
- 1 экзон кодирует лидерную последовательность.
- 2 и 3 экзоны - первые (б-1 или в-1) и вторые (б-2 или в-2) внешние домены соответственно.
- 4 экзон кодирует трансмембранный участок и часть цитоплазматического фрагмента.
- 5 и 6 экзон - цитоплазматический «хвост»
Экспрессия и функции МНС II класса
Экспрессия антигены представлены на макрофагах, В-лимфоцитах и активированных Т-лимфоцитах.
Реакция трансплантат против хозяина
Рестрикция взаимодействий:
- · Т-h1
- · Т-h2
MHC-II. Зона «обслуживания» связана с внеклеточной средой и с клеточными органоидами (аппарат Гольджи, ЭПС, лизосомы, эндосомы и фагосомы).
Пептиды, образующиеся в данной зоне, имеют внеклеточное происхождение - это продукты протеолиза белков, захваченных клеткой посредством эндоцитоза или фагоцитоза. Молекулы MHC-II с помощью кальнексина экспонируются внутрь везикул (эндосом или фаголизосом) и только здесь, связавшись с пептидным АГ, принимают необходимую конформацию для дальнейшей экспрессии на мембране клетки.
Таким образом, молекулы MHC-II осуществляют представление АГ при развитии иммунных реакций на внеклеточные инфекции. Главную роль в этих реакциях играют CD4+ T-лимфоциты, распознающие АГ в комплексе с MHC-II. Этапы подготовки вирусных белков к взаимодействию с молекулами II класса главного комплекса гистосовместимости.
I этап - поглощение бактерий или их токсинов фагоцитирующей, способной к презентации антигена клеткой и разрушение захваченного материала до отдельных пептидов в фаголизосомах.
II этап - во внутреннем пространстве ЭПР происходит сборка молекул II класса, которые до встречи с пептидом комплексированы со с инвариантной цепью (Ii). Этот белок защищает молекулу II класса от случайной встречи с бактериальными пептидами в эндоплазматическом ретикулуме. Комплекс молекулы II класса с Ii покидает эндоплазматический ретикулум в составе вакуоли.
III этап - вакуоль, содержащая комплекс молекулы II класса с Ii, сливается с фаголизосомой. Протеазы разрушают Ii белок и снимают запрет на взаимодействие МНС II с бактериальными пептидами. Комплекс пептид + МНС II в составе секреторной вакуоли перемещается к мембране. Результат - экспрессия АГ пептида в комплексе с МНС II класса на клеточной поверхности.
Это обеспечивает доступность АГ пептида для TCR Т-клеток.
СРАВНЕНИЕ МНС I и II класса
Строение молекул HLA класса II принципиально сходно со строением молекул I класса, несмотря на различие в составе образующих их субъединиц.
ТМ - трансмембранный домен, ЦИТ - цитоплазматический домен, ВК - внеклеточный домен
Экспрессия на клеточной мембране